Module 04 · Cognition认知
Vision视觉
作者:Simona Buetti 和 Alejandro Lleras
University of Illinois at Urbana-Champaign
视觉是一种感觉通道,能以极少的身体努力,将光转化为对周围世界的心理体验。本模块概述这一转化中最重要的步骤,以及大脑如何运用不同策略,实现对环境的视觉理解。
学习目标
- 描述眼睛如何把光信息转化为神经能量。
- 理解大脑要从环境提取哪些信息,以及这些信息为什么有用。
- 描述视觉系统如何适应不同光照条件。
- 理解拥有两只眼睛的价值。
- 理解我们为什么具有色觉。
- 理解视觉与其他脑功能之间的相互依赖。
什么是视觉?
想想繁星满天的夜景。你仰望天空,来自遥远恒星的成千上万个光子撞入视网膜——眼球后部的感光结构。这些光子已有数百万年的历史,穿越宇宙后,最终遇到你的某个感光细胞。它们的旅程到此结束:仅千分之一秒,这一点光能就成为一种称为光激活(photoactivation)的光化学反应的能量来源。光能转化为神经能量,引发一连串神经活动,几百分之一秒后,你便意识到那颗遥远恒星的存在。光子把你和宇宙连接起来,这就是视觉的惊人力量。光把世界带到你面前,无需移动,你就知道外面有什么。还没听到朋友走来的声音,你已认出他们;无需品尝,也不必伸手摘取,就能区分树上成熟和未熟的果实。你还能判断朝你飞来的球有多快——它会击中你吗?你能打中它吗?
这一切如何发生?首先,光通过瞳孔这个小孔进入眼球,在角膜和晶状体的折射作用下,清晰地投射到视网膜上。“外部资源”部分提供了更详细的眼部结构介绍链接。在视网膜,约两亿个感光细胞把光转导为神经能量。
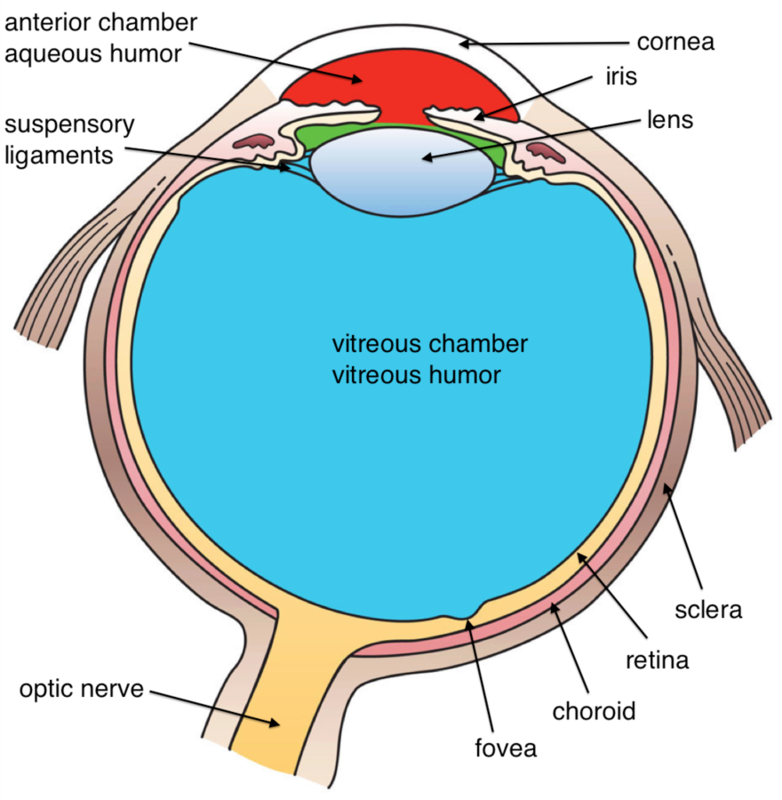
人眼示意图。[Image: Holly Fischer, https://goo.gl/cMOQdh, CC BY 3.0, https://goo.gl/EHHVdU]
大脑从这里开始编码光携带的远处物体与颜色信息。感光细胞有两种:视杆细胞(rods)和视锥细胞(cones)。人眼的视杆细胞多于视锥细胞。视杆细胞让我们对暗光敏感,能够夜间视物;视锥细胞让我们在明亮条件下分辨细节,并产生颜色感觉。视锥细胞密集分布在中央凹附近,即瞳孔后方视网膜的中央区域,在其他位置较稀疏。视杆细胞分布在周边,即中央凹周围区域,而中央凹中几乎没有。
视觉远比捕捉光子复杂。感光细胞编码的信息会经过快速、连续、越来越复杂的分析,使你最终理解外界。在中央凹,来自极小区域的信息分别编码;每个区域大约相当于在一臂远处看见的一根人类头发宽度的一半。这使大脑能够极其细致地重建你直视位置上的微小视觉差异。这种精细编码需要大量光,且从神经处理角度说,速度较慢。周边视野采用另一策略:牺牲细节换取敏感性,把较大区域的信息汇总。这种汇总很快,让你既能在极暗环境中察觉微弱信号,也能察觉周边视野中的突然运动。
对比的重要性
接下来会怎样?你可能以为,眼睛会记录世界各位置的光量,再送往大脑的视觉处理区域——皮层竟有 30% 受到视觉信号影响!但眼睛实际上并非这样工作。感光细胞一捕获光,神经系统就开始分析光的差异,传给大脑的正是这些差异。大脑并不太在意某一位置或整个场景的总光量,而更想知道:这一点的光,与旁边那一点是否不同?把手放在面前的桌上。手的轮廓实际上由手部皮肤与下方桌面反射光的差异,即对比(contrast),决定。要找到轮廓,只需找出图像中相邻两点光差异最大的区域。皮肤上两点反射的光量相近,桌面上两点也是如此;但落在手与桌面边界两侧的点,反射的光却很不同。
大脑重视编码对比,揭示了推动大脑进化的力量的一项重要特点:编码绝对光量,并不能告诉我们太多外界有什么。但如果能检测到眼前某处突然出现光的差异,就意味着那里出现了新事物。对比信号就是信息,可能代表喜欢的东西,如食物或朋友,也可能代表正在接近的危险,如老虎或悬崖。视觉系统的其他部分会努力判断它究竟是什么;但光进入眼睛后仅约 10 毫秒,视网膜神经节细胞就已编码眼前世界中所有的光差异。
对比如此重要,神经元不只编码光差异,还会放大差异,以免你错过。它们通过侧抑制(lateral inhibition)实现这一点。神经元对光作出放电反应时,产生两个信号:一个输出到视觉处理的下一层,另一个向侧面抑制相邻神经元。其依据是,相邻神经元很可能在响应来自邻近位置的相同光,因此信息有些冗余。神经元产生的侧抑制信号强度,与它接收的兴奋性输入成正比:放电越多,产生的抑制越强。图 1 展示了侧抑制如何放大表面边缘的对比信号。
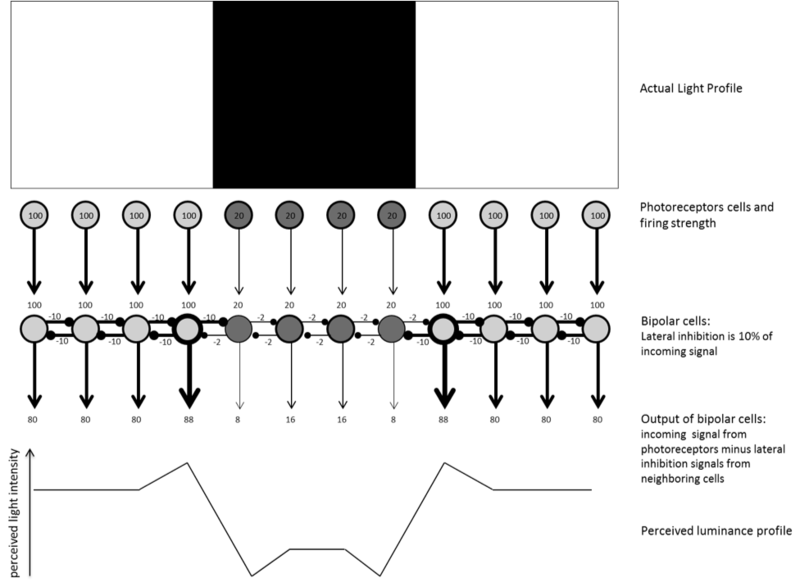
图 1. 侧抑制作用示意图。顶部是白色背景上的黑色条带。第一排圆圈表示感光细胞的分级反应:接收的光越多,放电越多。圈内数字表示放电量,线条粗细也表示神经放电强度。感光细胞激活视网膜下一层的双极细胞。双极细胞产生侧抑制信号,以末端带小圆圈的横线表示。抑制信号与接收的兴奋性输入成比例,为便于说明,此处设为 10%。接收 100 单位输入的细胞对邻居产生 10 单位抑制,接收 20 单位的则产生 2 单位抑制。双极细胞的输出等于输入减去邻近细胞的全部侧抑制。注意,边缘亮侧的放电率最高,为 88,而附近只编码亮光的神经元为 80。这是因为边缘细胞从“暗侧”邻居收到的抑制较小,为 -2。同样,边缘暗侧的放电率为 8,低于暗区其他位置的 16,因为它们从“亮侧”邻居收到的抑制较大,为 -10。总体上,图像被编码为亮光包围的黑条带;但侧抑制使所有边缘都得到了强调或增强,如图底部的知觉亮度曲线所示。
对不同光照条件的敏感性
视杆细胞与视锥细胞协同工作,帮助你在极暗与极亮环境之间转换时作出适应。[Image: Pexels, CC0 Public Domain, https://goo.gl/m25gce]
想一想,视觉系统每天必须应对多大范围的条件。晴天在户外散步,每秒有数十亿个光子进入眼睛;半夜在黑暗房间醒来时,每秒可能只有几百个。视觉系统依靠两类感光细胞的不同特性应对这些极端情况。光子稀少时主要由视杆细胞处理,一个光子就能使视杆细胞放电!但视杆细胞补充光激活所需的视色素需要时间。因此,在明亮条件下,它们很快发生漂白(Stuart & Brige, 1996),无法跟上持续到来的光子。此时视锥细胞就派上用场。视锥细胞需要更多光子才能放电,更关键的是,其视色素补充得比视杆细胞快得多,因此能应对充足光子。
突然改变光照条件会怎样?明亮光线下,视杆细胞已被漂白。进入黑暗环境后,它们需要时间完成化学恢复,最长可达 30 分钟(Hurley, 2002)。恢复后,你开始看见周围原本看不见的东西,这称为暗适应(dark adaptation)。从黑暗走向强光,例如驶出公路隧道时,视杆细胞会迅速被漂白,突然的光会让你约一秒看不见。但视锥细胞已经准备好放电,随后接管处理,让你很快能在较强光照下看清。
光照变化不那么剧烈时,也会发生类似但更细微的调整。比较夜间躺在床上读书和户外读书:房间可能感觉足够明亮,能供阅读,但灯泡并没有产生户外那样数十亿个光子。两种情况下,你都感觉环境照明良好,并不会觉得其中一种亮了数百万倍。这是因为视觉与许多知觉一样,并非按比例变化:接收两倍光子,不会产生两倍亮度的感觉。视觉系统会优先处理当前环境中最有信息量的一段对比值范围,以适应当前体验(Gardner et al., 2005)。这就是对比增益(contrast gain):视觉系统确定场景中的平均对比,最有效地表征其附近的数值,同时忽略较小的对比差异。演示见“外部资源”。
重建过程
信息离开眼睛、进入大脑后会怎样?神经元首先投射到丘脑中的外侧膝状体。信息随后分流,投射到两个不同脑部区域。有关反射性眼动的大多数计算,发生在进化较古老的皮层下区域。反射性眼动使眼睛迅速转向感兴趣的位置,并追踪移动物体。最终产生世界视觉体验的复杂计算,则发生在进化较新的皮层。皮层的第一站是初级视觉皮层(primary visual cortex,V1)。真正的“重建”从这里开始:神经元依据眼睛传来的对比信息,计算颜色和简单线条的信息,检测不同方向、粗细,也计算小范围运动信号(Hubel & Wiesel, 1962)。
信息流向系统中的其他“更高层”区域后,会接受更复杂的计算。例如,把边缘归到所属物体,将背景与前景分开,把颜色归到表面,并计算物体的整体运动。许多计算由专门脑区完成:MT 区处理整体运动信息;海马旁场所区识别地点和场景;梭状回面孔区专门识别需要精细辨别的对象,例如面孔。甚至还有专门处理字母和单词的脑区。这些视觉识别区域沿腹侧通路分布,也称“是什么”通路(What pathway)。沿背侧通路,即“在哪里及如何行动”通路(Where-and-How pathway)分布的其他区域,则计算自身及物体运动信息,让你与物体互动、在环境中行进并避开障碍(Goodale and Milner, 1992)。
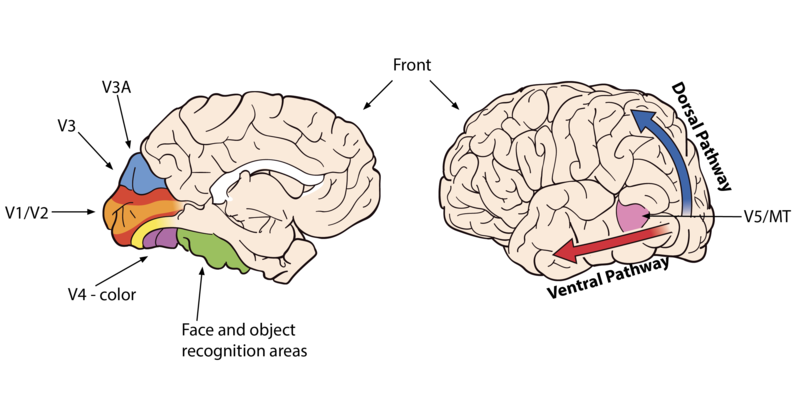
图 2:脑部区域
现在你已初步了解视觉系统,可以问自己:为什么有两只眼睛?目前讨论的一切,单眼信息似乎都能完成计算,为什么还需要两只?动物界给出了线索。经常成为猎物的动物,眼睛位于头骨两侧,这样捕食者无论从周围哪里出现,它们都能察觉。人类与多数捕食者一样,两眼朝向同一方向,把几乎相同的场景编码两次。这种冗余带来双眼优势(binocular advantage):既提供两次捕捉眼前信号的机会,也让大脑利用两眼视角的微小差异重建三维空间感,估计远处物体的距离、大小和体积。这并不简单:每只眼的信号都是世界的二维投影,如同视网膜上的两张独立图片,但大脑将它们结合,毫不费力地带来深度感。三维重建也高度依赖你通过经验获得的空间知识。例如,视觉系统会学习解释物体靠近或远离时,其体积、距离和大小如何变化。演示见“外部资源”。
颜色体验
视觉最美妙的方面之一,或许是它带来的丰富颜色体验。科学家的一个挑战,是理解人类为何拥有如今这样的色彩体验。你可能听说,狗只有两类颜色感光细胞,人类有三类,鸡有四类,螳螂虾有十六类。为什么物种间差异这么大?科学家认为,各物种在不同需求下进化,用颜色知觉传递与其食物、繁殖和健康相关的特有信息。例如,人类具有特定敏感性,能察觉肤色细微变化,判断他人是否尴尬、兴奋或生病。对我们这样的社会性物种,察觉这些微妙信号具有适应价值。
大脑如何编码颜色?两种主要色觉理论提出于 19 世纪中叶,大约一百年后才发现支持两者的生理证据(Svaetichin, 1956)。杨(Young,1802)和亥姆霍兹(Helmholtz,1867)提出三色说(trichromacy theory),认为眼睛有三类不同的颜色敏感细胞。其依据是:组合三盏不同色调灯的光,可以再现任何颜色。分别调节每盏灯的强度,就能找到匹配世界上任意颜色的组合。这一原理如今应用于电视、电脑屏幕和各种彩色显示器。仔细观察像素,会发现它由不同强度的蓝、红、绿光组成。人类视网膜有 S、M 和 L 三类视锥细胞,也分别称为蓝、绿、红视锥细胞,对三种不同波长的光敏感。
大约同一时期,赫林(Hering)发现了一个令人困惑的现象:有些颜色无法创造。混合两种颜色,可以产生偏黄的绿、偏蓝的红、偏绿的蓝和偏红的黄,却无法产生偏红的绿或偏蓝的黄。这一观察促使赫林(1892)提出颜色对立过程理论(opponent process theory):颜色通过红—绿、蓝—黄、黑—白三条对立通道编码。每条通道持续比较配对的两个成分。换句话说,编码的是两种色调之间的差异,而非简单组合。大脑关心的仍然是对比。一个成分强于另一个时,较强的颜色被感知,较弱的受到抑制。你可以通过下方链接体验这一现象。
http://nobaproject.com/assets/modules/module-visio...
一对颜色的强度相等时,色觉相互抵消,我们感知到某种灰色。这就是看不到偏红的绿或偏蓝的黄的原因:它们彼此抵消。如果你好奇黄色信号来自哪里,答案是对 M 和 L 视锥细胞信号求平均。这些颜色体验是人类独有的吗?有人认为是。例如,红—绿对比经过精细调节,能察觉人类肤色变化,让你看出他人脸红或变得苍白。因此,下次遛狗时,不妨看看夕阳,问自己:狗看到的是什么颜色?很可能并没有你所见的橙色色调!
那么,所有人的颜色体验都一样吗?你可以想象,色盲者看不到其他人所见的全部颜色,因为其视网膜缺少一类或多类视锥细胞。顺便说,有少数女性实际上具有四类视锥细胞;近期研究提示,她们的颜色体验可能比三类视锥细胞者更丰富,但并非总是如此。另一个略有不同的问题是:所有三色视觉者的内部颜色体验是否相同?你脑中的红色,与母亲脑中的红色一样吗?哲学家为此争论数千年,这几乎无法回答。但近期数据提示,颜色知觉方式可能确有文化差异。例如,各文化并不都以相同方式分类颜色。有些群体会把西方人称为“同一种”颜色的不同深浅,视为不同颜色类别。新几内亚的 Berinmo 部落,似乎把活叶的绿色与濒死叶片的绿色归入完全不同的类别。俄罗斯人也似乎把浅蓝和深蓝体验为不同类别,而多数西方人不会这样。脑成像研究还提示,学习新的颜色类别时,大脑会改变,白质体积增加!这些发现很有趣,也富有启示,似乎说明文化环境对世界各地人们使用和体验颜色的方式,可能存在虽小却明确的影响。
与其他感觉通道的整合
视觉不是一个封闭系统,而是与其他感觉通道互动并依赖它们。例如,头向一个方向移动时,眼睛会反射性地向相反方向移动,作出补偿,让视线保持在目标上。这称为前庭—眼反射(vestibulo-ocular reflex),通过整合视觉与前庭系统的信息实现;前庭系统感知身体运动和位置。你可以简单体验:先保持头部不动,直视前方,把手指在眼前左右晃动,注意它看起来有多模糊;再保持手指不动、盯着它看,同时左右转头。注意眼睛如何反射性地补偿头部运动,让手指图像保持清晰稳定。视觉也与本体感觉系统互动,帮助定位身体各部位;与听觉系统互动,帮助理解别人说话的声音。更多内容参见 Noba 的多模态知觉模块(http://noba.to/cezw4qyn)。
最后,视觉也常涉及一种称为联觉(synesthesia)的感觉融合现象,即一个感觉信号引起两种或更多感觉。最常见的是字形—颜色联觉。约每 200 人中就有一人,在看到特定字母、数字或词语时体验到相关颜色:数字 1 可能总呈红色,数字 2 总呈橙色,等等。更奇妙的联觉融合完全不同的感觉通道,例如味觉与颜色、音乐与颜色:鸡肉的味道可能引起绿色感觉,小提琴音色可能引起深紫色感觉。
我们对视觉的科学理解正处于令人振奋的时刻。我们才刚开始从功能上理解视觉系统,还不足以重建人工视觉系统,也就是还造不出像人类一样“看见”并理解光信号的机器人,但正在接近。近期视觉科学的重要突破,让研究者显著改善了视网膜假体:这些感光电路可植入盲人眼球后部,连接大脑视觉区域,部分恢复患者的“视觉体验”(Nirenberg & Pandarinath, 2012)。使用功能性磁共振脑成像,我们现在甚至能根据脑活动“解码”睡梦中看见的图像(Horikawa, Tamaki, Miyawaki, & Kamitani, 2013)!不过,仍有许多问题有待理解。想想:如果视觉是需要时间的构建过程,那么此刻看见的已不再是此刻眼前的状态。但人类仍能完成时间要求极高的壮举,例如在棒球比赛中击中时速 90 英里的快球。因此,视觉的基本功能似乎不仅是了解周围现在发生什么,还要准确推断接下来将看见什么(Enns & Lleras, 2008),使我们跟得上世界。理解大脑如何实现这种面向未来的预测功能,可能是这一迷人研究领域的下一个重大挑战。
外部资源
Video: Acquired knowledge and its impact on our three-dimensional interpretation of the world - 3D Street Art
Video: Acquired knowledge and its impact on our three-dimensional interpretation of the world - Anamorphic Illusions
Video: Acquired knowledge and its impact on our three-dimensional interpretation of the world - Optical Illusion
Web: Amazing library with visual phenomena and optical illusions, explained
http://michaelbach.de/ot/index.html
Web: Anatomy of the eye
https://www.aao.org/eye-health/anatomy/parts-of-eye
Web: Demonstration of contrast gain adaptation
https://michaelbach.de/ot/lum-contrastAdapt/
Web: Demonstration of illusory contours and lateral inhibition. Mach bands
http://michaelbach.de/ot/lum-MachBands/index.html
Web: Demonstration of illusory contrast and lateral inhibition. The Hermann grid
http://michaelbach.de/ot/lum_herGrid/
Web: Further information regarding what and where/how pathways
http://www.scholarpedia.org/article/What_and_where_pathways
讨论题
- 在黑暗中跑步时,有人建议不要直盯地面。为什么?怎样做能更好地避开障碍?
- 眼中多数神经节细胞专门检测某一位置光量的下降,即光变少时提高放电率。为什么缺少光可能比有光更重要?编码这类信息为何具有进化优势?
- 每只眼球都有一个称为视盘的孔,静脉从这里进入眼球,神经元的轴突,即神经节细胞轴突,从这里离开。为什么你不会一直看见世界中有两个洞?现在闭上一只眼,为什么仍看不见洞?要“体验”盲点,可按此网站说明操作:http://michaelbach.de/ot/cog_blindSpot/index.html
- 假设你要测试南太平洋新发现的一种猴子的颜色知觉能力,会如何开展?
- 情绪的一个重要方面是,我们感知自身情绪的方式,与视觉等其他知觉相似。你能否举例,用对比增益概念理解人们对情绪事件的反应?
术语表
Binocular advantage 双眼优势
与单眼相比,拥有双眼带来的益处。
Cones 视锥细胞
在明亮环境下工作、能够编码精细视觉细节的感光细胞。分为 S(蓝)、M(绿)和 L(红)三类,分别对略有不同的光敏感,三者共同产生色觉。
Contrast 对比
来自两个邻近位置的光,在数量与类型上的相对差异。
Contrast gain 对比增益
调节视觉系统敏感性,使其对环境中最常见的对比水平最敏感的过程。
Dark adaptation 暗适应
使你对极少量光变得敏感,从而能在近乎无光条件下看见东西的过程。
Lateral inhibition 侧抑制
神经元产生的、用于抑制邻近神经元反应的信号。
Opponent Process Theory 对立过程理论
一种色觉理论,假设红、绿、蓝、黄四种基本颜色组成红/绿和蓝/黄两对,世界中的颜色通过每对颜色间的对立或差异编码。另有黑/白一对,负责编码明暗对比。
Photoactivation 光激活
光到达感光细胞时发生、并产生神经信号的光化学反应。
Primary visual cortex (V1) 初级视觉皮层
位于头部后方枕叶皮层的脑区,负责处理基本视觉信息,例如检测简单线条及其粗细、方向,以及颜色和小范围运动。
Rods 视杆细胞
对光非常敏感、主要负责夜间视觉的感光细胞。
Synesthesia 联觉
两种或更多感觉体验的融合,或主要、直接感觉刺激的某些方面,自动激活次级、间接感觉体验的现象。
Trichromacy theory 三色说
认为全部颜色知觉从根本上基于三种,而非两种或四种,不同颜色信号组合的理论。
Vestibulo-ocular reflex 前庭—眼反射
协调运动与视觉信息,使你在移动时仍能保持注视同一物体的反射。
What pathway “是什么”通路
大脑中负责识别周围是什么事物的神经加工通路。
Where-and-How pathway “在哪里及如何行动”通路
大脑中负责确定事物位于何处,以及如何与其互动的神经加工通路。
References
- Enns, J. T., & Lleras, A. (2008). New evidence for prediction in human vision. Trends in Cognitive Sciences, 12¸ 327–333.
- Gardner, J. L., Sun, P., Waggoner, R. A. , Ueno, K., Tanaka, K., & Cheng, K. (2005). Contrast adaptation and representation in human early visual cortex. Neuron, 47, 607–620.
- Goodale, M. A., & Milner, A. D. (1992). Separate visual pathways for perception and action. Trends in Neuroscience, 15, 20–25.
- Helmholtz, H. von. (1867). Handbuch der Physiologischen Optik. Leipzig: Leopold Voss.
- Hering, E. (1892). Grundzüge der Lehre vom Lichtsinn. Berlin, Germany: Springer.
- Horikawa, T., Tamaki, M., Miyawaki, Y., & Kamitani, Y. (2013). Neural decoding of visual imagery during sleep. Science, 340(6132), 639–642.
- Hubel, D. H., & Wiesel, T. N. (1962). Receptive fields, binocular interaction, and functional architecture in the cat’s visual cortex. Journal of Physiology, 160, 106–154.
- Hurley, J. B. (2002). Shedding light on adaptation. Journal of General Physiology, 119, 125–128.
- Nirenberg, S., & Pandarinath, C. (2012). Retinal prosthetic strategy with the capacity to restore normal vision. Proceedings of the National Academy of Sciences, 109 (37), 15012–15017.
- Stuart, J. A., & Brige, R. R. (1996). Characterization of the primary photochemical events in bacteriorhodopsin and rhodopsin. In A. G. Lee (Ed.), Rhodopsin and G-protein linked receptors (Part A, Vol. 2, pp. 33–140). Greenwich, CT: JAI.
- Svaetichin, G. (1956). Spectral response curves from single cones, Actaphysiologica Scandinavia, Suppl. 134, 17–46.
- Young, T. (1802). Bakerian lecture: On the theory of light and colours. Philosophical Transaction of the Royal Society London, 92, 12–48.
Authors
Creative Commons License
Vision by Simona Buetti and Alejandro Lleras is licensed under a Creative Commons Attribution-NonCommercial-ShareAlike 4.0 International License. Permissions beyond the scope of this license may be available in our Licensing Agreement.
How to cite this Noba module using APA Style
Buetti, S. & Lleras, A. (2024). Vision. In R. Biswas-Diener & E. Diener (Eds), Noba textbook series: Psychology. Champaign, IL: DEF publishers. Retrieved from http://noba.to/ngkr7ebh