Module 05 · Self and others自我与他人
Affective Neuroscience情感神经科学
作者:Eddie Harmon-Jones 和 Cindy Harmon-Jones
University of New South Wales
本模块简要概述情绪的神经科学。它综合人类和动物研究的发现,描述参与基本情感系统的大脑网络及相关神经递质。
学习目标
- 定义情感神经科学。
- 描述用于研究人类和动物情绪的神经科学技术。
- 说出五种情绪系统及其相关的神经结构和神经递质。
- 举例说明影响情感系统的外源性化学物质(如药物),并讨论它们的作用。
- 讨论杏仁核和伏隔核的多种情感功能。
- 说出几种具体的人类情绪,并讨论它们与非人类动物情感系统的关系。
情感神经科学是什么?
情感(affective)神经科学研究大脑如何产生情绪反应。情绪是一种心理现象,涉及身体的变化(如面部表情)、自主神经系统活动的变化、感受状态(主观反应),以及以特定方式行动的冲动(动机;Izard, 2010)。情感神经科学(neuroscience)旨在理解物质(大脑结构和化学物质)如何产生心智最迷人的方面之一——情绪。情感神经科学使用无偏的、可观察的测量方法,为其他学科和普通人提供关于情绪重要性的可信证据。它还促成了针对情感障碍(如抑郁症)的生物学疗法。
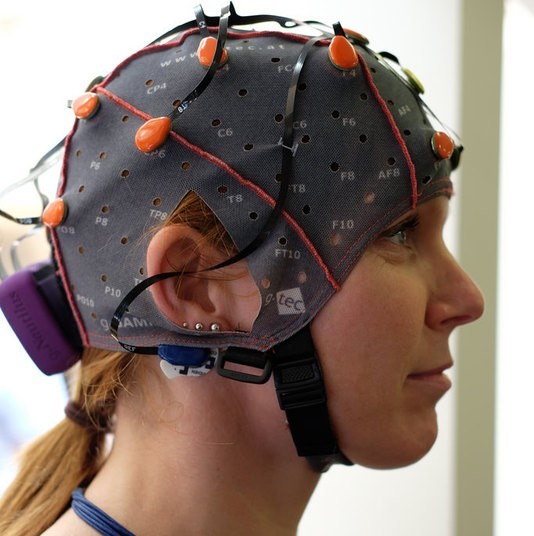
尽管我们时时刻刻都在体验情绪,但情绪很难描述和研究。幸运的是,技术进步正在让这件事变得容易一些。[Image: Waag Society, https://goo.gl/F0KdnB, CC BY-NC-SA 2.0, https://goo.gl/iF4hmM]
人类的大脑及其反应(包括情绪)复杂而灵活。相比之下,非人类动物的神经系统更简单,情绪反应也更基本。电极植入、损毁和激素注射等侵入性神经科学技术,在动物身上比在人身上更容易使用。人类神经科学主要依靠非侵入性技术,如脑电图(electroencephalography, EEG)和功能性磁共振成像(functional magnetic resonance imaging, fMRI),以及对因意外或疾病而脑损伤的个体的研究。因此,动物研究为理解人类的情感过程提供了有用的模型。在其他物种,尤其是大鼠、狗和猴子等社会性哺乳动物身上发现的情感回路,其功能与人类的情感网络相似,尽管非人类动物的大脑更为基本。
在人类身上,情绪及其相关神经系统还具有更多层次的复杂性和灵活性。与动物相比,人类会体验到种类繁多、细微复杂、有时相互冲突的情绪。人类对这些情绪的反应方式也很复杂:除了情绪反应,有意识的目标、价值观和其他认知也会影响行为。不过,本模块关注的是生物体之间的相似之处,而不是差异。我们常用“生物体”(organism)一词指正在体验某种情绪或显示出特定神经激活证据的个体。生物体可以是大鼠、猴子或人。
在各个物种中,情绪反应都围绕生物体的生存和繁殖需要而组织起来。情绪影响知觉、认知和行为,帮助生物体生存并繁衍兴旺(Farb, Chapman, & Anderson, 2013)。大脑中由多个结构组成的网络对不同需要作出反应,不同情绪之间存在一些重叠。具体的情绪并不位于大脑的某一个结构中。相反,情绪反应涉及激活网络,任何情绪过程中都有大脑的许多部位被激活。事实上,参与情绪反应的大脑回路几乎涵盖整个大脑(Berridge & Kringelbach, 2013)。位于大脑深处、大脑皮层以下的回路主要负责产生基本情绪(Berridge & Kringelbach, 2013;Panksepp & Biven, 2012)。过去的研究关注的是本文将介绍的一些特定大脑结构,但未来的研究可能会发现,大脑的其他区域在这些过程中同样重要。
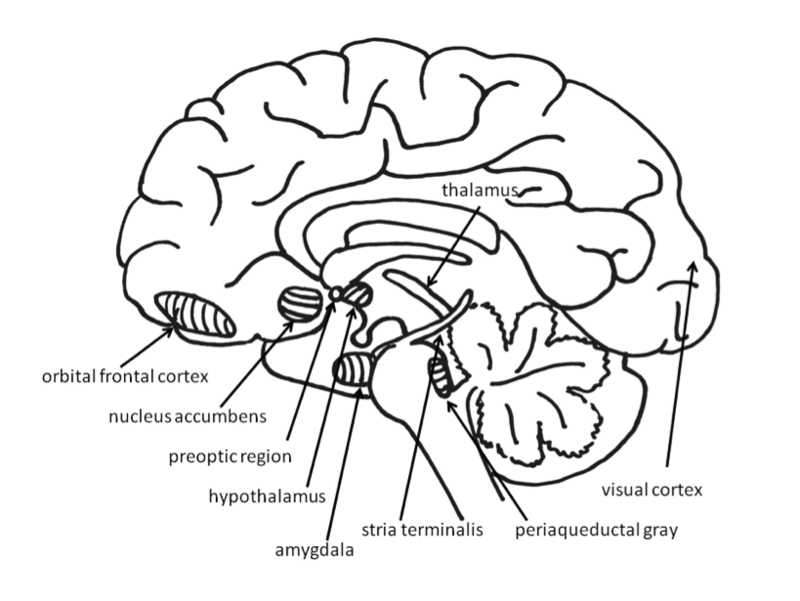
图 1:大脑中的结构
基本情绪
欲望:寻求奖赏的神经系统
最重要的情感神经系统之一与欲望感,即对奖赏的欲求有关。研究者用“想要”(wanting;Berridge & Kringelbach, 2008)、“寻求”(seeking;Panksepp & Biven, 2012)或“行为激活敏感性”(behavioural activation sensitivity;Gray, 1987)等术语指称这些欲求过程。当欲求系统被唤起时,生物体会表现出热情、兴趣和好奇心。这些神经回路驱使动物在环境中四处活动,寻找奖赏,如美味的食物、有吸引力的性伴侣以及其他令人愉快的刺激。当欲求系统唤起不足时,生物体显得抑郁、无助。
关于这一系统所涉及结构的许多证据,来自使用直接脑刺激的动物研究。当电极植入外侧下丘脑(hypothalamus),或植入与下丘脑相连的皮层或中脑区域时,动物会按压杠杆来给自己施加电刺激,这表明它们觉得这种刺激令人愉快。欲望系统中的区域还包括杏仁核、伏隔核和额叶皮层(frontal cortex)(Panksepp & Biven, 2012)。在中脑边缘和中脑皮层多巴胺回路中产生的神经递质多巴胺,会激活这些区域。它带来兴奋感、意义感和期待感。这些结构对可卡因和苯丙胺等药物也很敏感,这些化学物质的作用与多巴胺相似(Panksepp & Biven, 2012)。
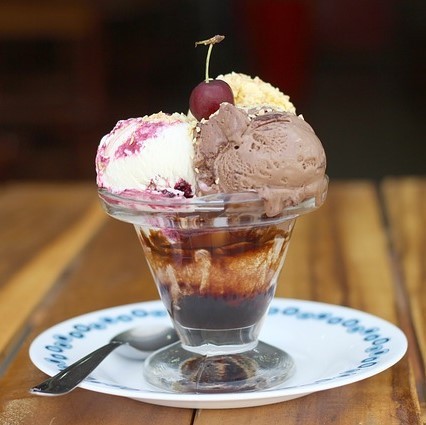
仅仅看一张诱人食物的图片,就应该会增加你左侧额叶皮层的活动。好吃![Image: CC0 Public Domain, https://goo.gl/m25gce]
对人类和非人类动物的研究都表明,在欲望和兴趣等欲求性情绪中,左侧额叶皮层(与右侧额叶皮层相比)更为活跃。研究者最初注意到,左侧额叶皮层受损的人会出现抑郁,而右侧额叶皮层受损的人会出现躁狂(Goldstein, 1939)。左侧额叶激活与趋近相关情绪之间的关系,已在健康个体中通过 EEG 和 fMRI 得到证实(Berkman & Lieberman, 2010)。例如,出生 2 到 3 天的婴儿舌头上被放上蔗糖时(Fox & Davidson, 1986),以及饥饿的成年人观看诱人甜点的图片时(Gable & Harmon-Jones, 2008),左侧额叶激活都会增加。此外,研究发现,在欲求情境中更强的左侧额叶活动与多巴胺有关(Wacker, Mueller, Pizzagalli, Hennig, & Stemmler, 2013)。
“喜欢”:愉悦与享受的神经回路
令人惊讶的是,一个人对某种奖赏的欲望程度,不一定与他或她对这种奖赏的喜欢程度相对应。这是因为参与享受奖赏的神经结构,不同于参与渴望奖赏的神经结构。在婴儿和非人类动物身上,“喜欢”(例如对甜味液体的享受)可以通过舔舐速度、伸舌动作和愉快的面部表情来测量;而“想要”(欲望)则表现为愿意努力工作以获得奖赏(Berridge & Kringelbach, 2008)。在药物滥用等主题的研究中,喜欢已与想要区分开来。例如,吸毒成瘾者即使知道现有的毒品不会带来快感,也常常仍然渴望毒品(Stewart, de Wit, & Eikelboom, 1984)。
关于喜欢的研究集中在伏隔核(nucleus accumbens)内的一小块区域,以及腹侧苍白球的后半部分。这些脑区对阿片类物质和内源性大麻素敏感。刺激奖赏系统的其他区域会增加想要,却不会增加喜欢,在某些情况下甚至会减少喜欢。关于欲望与享受之区别的研究,有助于理解人类的成瘾,特别是理解为什么人们常常继续疯狂追逐可卡因、阿片类药物、赌博或性等奖赏,即使由于习惯化,他们已经不再从获得这些奖赏中体验到快感。
愉悦体验还涉及眶额皮层。当猴子品尝诱人的食物,甚至只是看到这些食物的图片时,这一区域的神经元就会放电。在人类身上,这一区域会被令人愉快的刺激激活,包括金钱、宜人的气味和有吸引力的面孔(Gottfried, O’Doherty & Dolan, 2002;O’Doherty, Deichmann, Critchley, & Dolan, 2002;O’Doherty, Kringelbach, Rolls, Hornak, & Andrews, 2001;O’Doherty, Winston, Critchley, Perrett, Burt, & Dolan, 2003)。
恐惧:僵住与逃跑的神经系统
由于恐惧对我们的生存如此重要(即恐惧会在有东西威胁我们时提醒我们),我们的大脑甚至能在我们有意识地觉察到可怕刺激之前就“识别”出它们。[Image: CC0 Public Domain, https://goo.gl/m25gce]
恐惧是一种不愉快的情绪,驱使生物体回避可能有害的情境。轻微刺激大脑中与恐惧相关的区域会使动物僵住不动,而强烈刺激则会使它们逃跑。恐惧回路从中央杏仁核一直延伸到中脑的导水管周围灰质(periaqueductal gray)。这些结构对谷氨酸、促肾上腺皮质激素释放因子、促肾上腺皮质激素、胆囊收缩素以及几种不同的神经肽敏感。苯二氮䓬类药物和其他镇静剂会抑制这些区域的激活(Panksepp & Biven, 2012)。
杏仁核(amygdala)在恐惧反应中的作用已得到广泛研究。也许因为恐惧对生存如此重要,有两条通路把信号从感觉器官传送到杏仁核。例如,当一个人看到一条蛇时,感觉信息从眼睛传到丘脑(thalamus),然后传到视觉皮层。视觉皮层(visual cortex)再把信息传给杏仁核,引发恐惧反应。然而,丘脑也会迅速把信息直接送往杏仁核,使生物体能在有意识地知觉到蛇之前就作出反应(LeDoux, Farb, & Ruggiero, 1990)。从丘脑到杏仁核的通路速度快,但不如从视觉皮层出发的较慢通路准确。杏仁核或腹侧海马区域受损,会干扰人类和非人类动物的恐惧条件作用(LeDoux, 1996)。
暴怒:愤怒与攻击的回路
愤怒或暴怒是一种高唤醒、不愉快的情绪,驱使生物体趋近并攻击(Harmon-Jones, Harmon-Jones, & Price, 2013)。目标受挫、身体疼痛或身体受限都可能引发愤怒。在有领地意识的动物中,陌生者进入生物体的家园领地会激起愤怒(Blanchard & Blanchard, 2003)。愤怒和恐惧的神经网络彼此邻近,但相互独立(Panksepp & Biven, 2012)。它们从内侧杏仁核出发,经过下丘脑的特定部位,一直延伸到中脑的导水管周围灰质。愤怒回路与欲求回路相连,因此得不到预期的奖赏可能激起暴怒。此外,人在被激怒时,左侧额叶皮层激活会增加,这支持了愤怒是一种趋近相关情绪的观点(Harmon-Jones et al., 2013)。参与暴怒的神经递质目前尚未被充分了解,但 P 物质(Substance P)可能起着重要作用(Panksepp & Biven, 2012)。其他可能与愤怒有关的神经化学物质包括睾酮(Peterson & Harmon-Jones, 2012)和精氨酸加压素(Heinrichs, von Dawans, & Domes, 2009)。有几种化学物质会抑制暴怒系统,包括阿片类物质和高剂量的抗精神病药,如氯丙嗪(Panksepp & Biven, 2012)。
爱:照料与依恋的神经系统
正如今天的科学家区分“浪漫之爱”和“父母之爱”等不同类型的爱,古希腊人也用“eros”(情爱)和“storge”(亲情之爱)这两个词加以区分。[Image: Go-tea 郭天, https://goo.gl/KLFxJP, CC BY 2.0, https://goo.gl/zHmGV2]
对于人类这样的社会性动物,对同一物种其他成员的依恋会产生依恋的积极情绪:爱、温暖的感受和亲情。驱动养育行为的情绪(如母性照料),与驱动个体靠近依恋对象以获得照料和保护的情绪(如婴儿依恋),是可以区分的。母性养育的重要区域包括背侧视前区(preoptic area)(Numan & Insel, 2003)和终纹(stria terminalis)床核(Panksepp, 1998)。这些区域与参与性欲的区域相互重叠,并对一些相同的神经递质敏感,包括催产素、精氨酸加压素和内源性阿片肽(内啡肽和脑啡肽)。
悲伤:孤独与恐慌的神经网络
参与婴儿依恋的神经网络对分离也很敏感。这些区域会产生悲伤、恐慌和孤独等痛苦情绪。当人类婴儿或其他哺乳动物幼崽与母亲分离时,会发出痛苦的叫声,即哭泣。依恋回路就是那些在受到电刺激时会使生物体发出痛苦叫声的回路。
依恋系统起始于中脑导水管周围灰质,非常靠近产生身体疼痛反应的区域,这表明它可能起源于疼痛回路(Panksepp, 1998)。刺激背内侧丘脑、腹侧隔区、背侧视前区以及终纹床核的一些区域(靠近性回路和母性回路;Panksepp, Normansell, Herman, Bishop, & Crepeau, 1988),也能引发分离痛苦。
这些区域对内源性阿片、催产素和催乳素敏感。所有这些神经递质都能防止分离痛苦。吗啡和海洛因等阿片类药物以及尼古丁,会人为地产生愉悦感和满足感,类似于积极的社会互动中通常产生的感受。这或许可以解释这些药物为何会让人成瘾。惊恐发作似乎是依恋系统引发的一种强烈的分离痛苦,而阿片类物质能有效缓解惊恐。睾酮也能减少分离痛苦,可能是通过降低依恋需要实现的。与此一致,惊恐发作在女性中比在男性中更常见。
可塑性:经历能够改变大脑
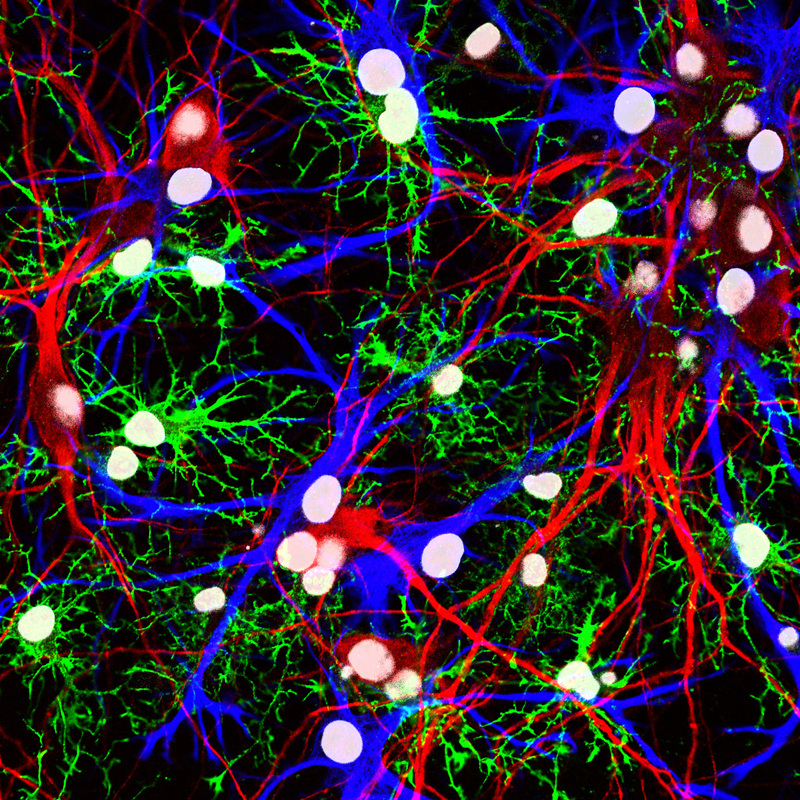
神经可塑性可以用一句话概括:“一起放电的神经元会连接在一起。”换言之,当某些情绪与某些情境配对出现时,我们就会学会把二者联系起来。[Image: NICHD NIH, https://goo.gl/T3PUlg, CC BY 2.0, https://goo.gl/BRvSA7]
特定神经区域的反应可能会被经历改变。例如,伏隔核壳的前部通常参与进食等欲求行为,后部则通常参与恐惧性防御行为(Reynolds & Berridge, 2001,2002)。使用人类神经影像的研究也揭示了伏隔核功能上的这种前后区分(Seymour, Daw, Dayan, Singer, & Dolan, 2007)。然而,当大鼠暴露在充满压力的环境中时,它们产生恐惧的区域会向前扩展,几乎占满伏隔核壳的 90%。另一方面,当大鼠处于偏好的家园环境中时,产生恐惧的区域会缩小,而欲求区域向后扩展,占据伏隔核壳约 90% 的范围(Reynolds & Berridge, 2008)。
大脑结构具有多重功能
尽管许多情感神经科学研究强调的是杏仁核和伏隔核这样的整体结构,但需要注意的是,其中许多结构更准确地说应称为复合体。它们包含执行不同任务的不同核团。目前,fMRI 等人类神经影像技术还无法像侵入性动物神经科学那样考察单个核团的活动。例如,非人灵长类动物的杏仁核可分为 13 个核团和皮层区域(Freese & Amaral, 2009)。杏仁核的这些区域执行不同的功能。中央核向脑干区域发出输出,产生先天的情绪表情及相关的生理反应。基底核与纹状体区域相连,这些区域参与跑向安全处等动作。此外,不可能在情绪和脑区之间建立一一对应的映射。例如,大量研究考察了杏仁核在恐惧中的作用,但研究也表明,杏仁核在不确定状态下(Whalen, 1998)以及积极情绪中(Anderson et al., 2003;Schulkin, 1990)同样活跃。
结论
情感神经科学研究增进了我们对情绪、动机和行为过程的认识。对非人类动物基本情绪系统的研究,为了解更复杂的人类情绪如何组织和发展提供了信息。尽管仍有许多有待发现之处,但情感神经科学目前的发现已经影响了我们对药物使用与滥用、惊恐障碍等心理障碍,以及欲望与享受、悲伤与爱等复杂人类情绪的理解。
外部资源
Video: A 1-hour interview with Jaak Panksepp, the father of affective neuroscience
Video: A 15-minute interview with Kent Berridge on pleasure in the brain
Video: A 5-minute interview with Joseph LeDoux on the amygdala and fear
Web: Brain anatomy interactive 3D model
http://www.pbs.org/wnet/brain/3d/index.html
讨论题
- “喜欢”的神经回路不同于“想要”的神经回路。这与人们在节食、戒除成瘾或尝试改变其他习惯时遇到的问题可能有什么关系?
- 在社会接触中产生愉悦的结构和神经递质,也会在生物体被剥夺社会接触时产生恐慌和悲伤。这对理解爱有什么帮助?
- 研究表明,充满压力的环境会扩大伏隔核中对恐惧敏感的区域,而偏好的环境会扩大对奖赏敏感的区域。这些变化可能具有怎样的适应意义?
术语表
Affect 情感
一种情绪过程;包括心境、主观感受和离散情绪。
Amygdala 杏仁核
位于大脑内侧颞叶的两个杏仁状结构。
Hypothalamus 下丘脑
位于丘脑下方、脑干上方的一个大脑结构。
Neuroscience 神经科学
对神经系统的研究。
Nucleus accumbens 伏隔核
基底前脑中位于视前区前方的一个区域。
Orbital frontal cortex 眶额皮层
大脑额叶中位于眼眶上方的一个区域。
Periaqueductal gray 导水管周围灰质
中脑内靠近大脑导水管的灰质。
Preoptic region 视前区
下丘脑前部的一部分。
Stria terminalis 终纹
沿丘脑上表面走行的一束纤维。
Thalamus 丘脑
位于大脑中线、介于中脑和大脑皮层之间的一个结构。
Visual cortex 视觉皮层
大脑中负责加工视觉信息的部分,位于大脑后部。
References
- Anderson, A. K., Christoff, K., Stappen, I., Panitz, D., Ghahremani, D. G., Glover, G., . . . Sobel, N. (2003). Dissociated neural representations of intensity and valence in human olfaction. Nature Neuroscience, 6, 196–202.
- Berkman, E. T., & Lieberman, M. D. (2010). Approaching the bad and avoiding the good: Lateral prefrontal cortical asymmetry distinguishes between action and valence. Journal of Cognitive Neuroscience, 22(9), 1970–1979. doi: 10.1162/jocn.2009.21317
- Berridge, K. C., & Kringelbach, M. L. (2013). Neuroscience of affect: brain mechanisms of pleasure and displeasure. Current Opinion in Neurobiology, 23, 294–303. doi.org/10.1016/j.conb.2013.01.017
- Berridge, K. C., & Kringelbach, M. L. (2008). Affective neuroscience of pleasure: Reward in humans and animals. Psychopharmacology, 199, 457–480. doi: 10.1007/s00213-008-1099-6
- Blanchard, D. C., & Blanchard, R. J. (2003). What can animal aggression research tell us about human aggression? Hormones and Behavior, 44, 171–177.
- Farb, N.A.S., Chapman, H. A., & Anderson, A. K. (2013). Emotions: Form follows function. Current Opinion in Neurobiology, 23, 393–398. http://dx.doi.org/10.1016/j.conb.2013.01.015
- Fox, N. A., & Davidson, R. J. (1986). Taste-elicited changes in facial signs of emotion and the asymmetry of brain electrical activity in human newborns. Neuropsychologia, 24, 417–422.
- Freese, J. L., & Amaral, D. G. (2009). Neuroanatomy of the primate amygdala. In P. J. Whalen & E. A. Phelps (Eds.), The human amygdala (pp. 3–42). New York, NY: Guilford Press.
- Gable, P. A., & Harmon-Jones, E. (2008). Relative left frontal activation to appetitive stimuli: Considering the role of individual differences. Psychophysiology, 45, 275-278.
- Goldstein, K. (1939). The organism: An holistic approach to biology, derived from pathological data in man. New York, NY: American Book.
- Gottfried, J. A., O’Doherty, J., & Dolan, R. J. (2002). Appetitive and aversive olfactory learning in humans studied using event-related functional magnetic resonance imaging. Journal of Neuroscience, 22, 10829–10837.
- Gray, J. A. (1987). The psychology of fear and stress (2nd ed.). Cambridge, England: Cambridge University Press.
- Harmon-Jones, E., Harmon-Jones, C., & Price, T. F. (2013). What is approach motivation? Emotion Review, 5, 291–295. doi: 10.1177/1754073913477509
- Heinrichs, M., von Dawans, B., & Domes, G. (2009). Oxytocin, vasopressin, and human social behavior. Frontiers in Neuroendocrinology, 30, 548–557.
- Izard, C. E. (2010). The many meanings/aspects of emotion: Definitions, functions, activation, and regulation. Emotion Review, 2, 363–370. doi: 10.1177/1754073910374661
- LeDoux, J. E. (1996). The emotional brain: The mysterious underpinnings of emotional life. New York, NY: Simon & Schuster.
- LeDoux, J. E., Farb, C. F., Ruggiero, D. A. (1990). Topographic organization of neurons in the acoustic thalamus that project to the amygdala. Journal of Neuroscience, 10, 1043–1054.
- Numan, M., & Insel, T. R. (2003). The neurobiology of parental behavior. New York, NY: SpringerVerlag.
- O’Doherty J. P., Deichmann, R., Critchley, H. D., & Dolan, R. J. (2002). Neural responses during anticipation of a primary taste reward. Neuron, 33, 815–826.
- O’Doherty, J., Kringelbach, M. L., Rolls, E. T., Hornak, J., & Andrews, C. (2001). Abstract reward and punishment representations in the human orbitofrontal cortex. Nature Neuroscience, 4, 95–102.
- O’Doherty, J., Winston, J., Critchley, H., Perrett, D., Burt, D. M., & Dolan, R. J. (2003). Beauty in a smile: The role of medial orbitofrontal cortex in facial attractiveness. Neuropsychologia, 41, 147–155.
- Panksepp, J. (1998). Affective neuroscience: The foundations of human and animal emotions. New York, NY: Oxford University Press.
- Panksepp, J., & Biven, L. (2012). The archaeology of mind: Neuroevolutionary origins of human emotions. New York, NY: Norton.
- Panksepp, J., Normansell, L., Herman, B., Bishop, P., & Crepeau, L. (1988). Neural and neurochemical control of the separation distress call. In J. D. Newman (Ed.), The physiological control of mammalian vocalization (pp. 263–299). New York, NY: Plenum.
- Peterson, C. K., & Harmon-Jones, E. (2012). Anger and testosterone: Evidence that situationally-induced anger relates to situationally-induced testosterone. Emotion, 12, 899–902. doi: 10.1037/a0025300
- Reynolds, S. M., & Berridge, K. C. (2008). Emotional environments retune the valence of appetitive versus fearful functions in nucleus accumbens. Nature Neuroscience, 11, 423–425.
- Reynolds, S. M., & Berridge, K. C. (2002). Positive and negative motivation in nucleus accumbens shell: Bivalent rostrocaudal gradients for GABA-elicited eating, taste “liking”/“disliking” reactions, place preference/avoidance, and fear. Journal of Neuroscience, 22, 7308–7320.
- Reynolds, S. M., & Berridge, K. C. (2001). Fear and feeding in the nucleus accumbens shell: Rostrocaudal segregation of GABA-elicited defensive behavior versus eating behavior. Journal of Neuroscience, 21, 3261–3270.
- Schulkin, J. (1991). Sodium hunger: The search for a salty taste. New York, NY: Cambridge University Press.
- Seymour, B., Daw, N., Dayan, P., Singer, T., & Dolan, R. (2007). Differential encoding of losses and gains in the human striatum. Journal of Neuroscience, 27, 4826–4831.
- Stewart, J., De Wit, H., & Eikelboom, R. (1984). Role of unconditioned and conditioned drug effects in the self-administration of opiates and stimulants. Psychological Review, 91, 251-268.
- Wacker, J., Mueller, E. M., Pizzagalli, D. A., Hennig, J., & Stemmler, G. (2013). Dopamine-D2-receptor blockade reverses the association between trait approach motivation and frontal asymmetry in an approach-motivation context. Psychological Science, 24(4), 489–497. doi: 10.1177/0956797612458935
- Whalen, P. J. (1998). Fear, vigilance, and ambiguity: initial neuroimaging studies of the human amygdala. Current Directions in Psychological Science, 7, 177–188.
Authors
Creative Commons License
Affective Neuroscience by Eddie Harmon-Jones and Cindy Harmon-Jones is licensed under a Creative Commons Attribution-NonCommercial-ShareAlike 4.0 International License. Permissions beyond the scope of this license may be available in our Licensing Agreement.
How to cite this Noba module using APA Style
Harmon-Jones, E. & Harmon-Jones, C. (2024). Affective neuroscience. In R. Biswas-Diener & E. Diener (Eds), Noba textbook series: Psychology. Champaign, IL: DEF publishers. Retrieved from http://noba.to/qnv3erb9
Source: https://nobaproject.com/modules/affective-neuroscience